



MALAT1/miR-143/VEGFA-as Drijft Endotheelsschade aan tot Intracraniële Aneurysma
Samenvatting
De rollen van sommige lange niet-coderende RNA's (lncRNA's) in intracraniële aneurysma (IA) zijn in veel studies onderzocht. Het doel van deze studie is het verduidelijken van het mechanisme van de lncRNA metastase-geassocieerde longadenocarcinoom transcript 1 (MALAT1)/microRNA-143 (miR-143)/vasculaire endotheliale groeifactor-A (VEGFA) signaalas in vasculaire endotheelschaade-geïnduceerde IA. MALAT1, miR-143 en VEGFA expressie in IA-weefsels en normale arteriële weefsels werden gedetecteerd. Matrix metalloproteinase 9 (MMP-9) in weefsels, von Willebrand factor (vWF) in serum en weefsels, en endotheline-1 (ET-1) in serum werden gedetecteerd. Gemodelleerde IA-ratten werden geïnjecteerd met gedempte of overexprimeerde MALAT1 voor het detecteren van vasculaire endotheelschaade. Vasculaire endotheelcellen van patiënten met IA werden geïsoleerd en getransfecteerd met gedempte of overexprimeerde MALAT1 om de impact van MALAT1 op celviabiliteit en apoptose te verifiëren. De connecties tussen MALAT1, miR-143 en VEGFA werden geverifieerd door online voorspelling, luciferase-activiteit en RNA-pull down assays. Overexpressie van MALAT1 en VEGFA en lage expressie van miR-143 werden gevonden in IA-weefsels. Downregulatie van MALAT1 remde bloeddruk, de expressie van ET-1, vWF en MMP-9, evenals de apoptotische index van vasculaire endotheelcellen van ratten met IA. Gedownreguleerde MALAT1 remde apoptose en bevorderde viabiliteit van vasculaire endotheelcellen in IA. MALAT1 bond aan miR-143 en miR-143 targette VEGFA. Deze studie suggereert dat MALAT1 VEGFA-expressie verhoogt door competitieve binding aan miR-143, waardoor apoptose wordt versterkt en viabiliteit van vasculaire endotheelcellen in IA wordt verzwakt.
Inleiding
Intracraniële aneurysma (IA), ook bekend als cerebrale aneurysma, wordt veroorzaakt door de toename van de intracraniële druk geïnduceerd door de lokale abnormale verwijding van de cerebrale arteriële caviteit of arteriewand. IA is een ernste ziekte met hoge sterfte en morbiditeit, en de prevalentie is ongeveer 1-3% in de algemene bevolking. De belangrijkste klinische kenmerken van IA zijn cerebrale vasospasme, spontane cerebrale bloeding en oculomotoriuszenuwparese. Tot nu toe omvatten de veelvoorkomende risicofactoren die leiden tot het ontstaan en de ontwikkeling van IA hemodynamische stoornissen, genen, veroudering, infecties en congenitale factoren. De hoofdklienische behandelingen, voornamelijk chirurgische clipping en/of endovasculaire coiling, functioneren om aneurysmabrud te voorkomen. Echter, het gedetailleerde mechanisme dat ten grondslag ligt aan IA blijft nog te verduidelijken, wat de dringende behoefte aan meer effectieve methoden in het beheer van IA weerspiegelt.
Lange niet-coderende RNA's (lncRNA's) zijn langer dan 200 nucleotiden en behoren tot een soort niet-coderende RNA's. Het is gerapporteerd dat de expressie van lncRNA groeistilstand-geassocieerde lncRNA 1 in IA is gedowngereguleerd en longadenocarcinoom transcript 1 (MALAT1) is een hoog verrijkte en breed geëxprimeerde lncRNA wiens lengte ongeveer 8000 nt is. MALAT1 is gedocumenteerd om gladde spierdysfunctie in thoracale aortaanenrysma te moduleren. Ook heeft een studie de abnormale expressie van lncRNA's en messenger RNA (mRNA) in IA gepresenteerd, en de lncRNA-mRNA co-expressienetwerken leveren aanwijzingen om de pathogenese van IA te vinden. MALAT1 is voorgesteld om osterix-expressie te bevorderen en osteogene differentiatie te moduleren via targeting van miRNA-143 (miR-143) expressie in humane botmerg mesenchymale stamcellen. Een studie heeft ook de rol van miR-143/145 cluster gepresenteerd in het omkeren van de regulatie van krüppel-achtige factor 5 in de gladde spiercellen en zijn contractiliteit en proliferatie in IA. Volgens Feng et al. kan downregulatie van miR-143/145 en hogere matrix metalloproteinase-9 (MMP-9) waarden tijdens circulatie gerelateerd zijn aan de vorming en ruptuur van IA. Een analyse heeft onthuld dat de meest gedereguleerde miRNAs (miR-143 en miR-145) gemeenschappelijke doelgenen zijn die signaalpaden zijn, zoals vasculaire endotheliale groeifactor (VEGF), en andere genen die cellulaire beweging of adhesie reguleren. Een studie heeft het voorspellende belang van vasculaire endotheliale groeifactor-A (VEGFA) variaties in IA onthuld. Daarom zochten we het mechanisme van de MALAT1/miR-143/VEGFA signaalas in IA geïnduceerd door vasculaire endotheelschaade te evalueren.
Materialen en Methodes
Ethische Verklaring
De studie werd goedgekeurd door het Institutioneel Review Board van The First Affiliated Hospital of USTC, Division of Life Sciences and Medicine, University of Science and Technology of China en volgde de beginselen van de Verklaring van Helsinki. Deelnemers gaven schriftelijke geïnformeerde toestemming in deze studie. Alle dierexperimenten waren in lijn met de Richtlijnen voor de Zorg en Gebruik van Laboratoriumdieren van de National Institutes of Health. Het protocol was toegestaan door de Commissie op de Ethiek van Dierexperimenten van The First Affiliated Hospital of USTC, Division of Life Sciences and Medicine, University of Science and Technology of China.
Studie-onderwerpen
Twintig IA-patiënten (IA-groep) die waren gediagnosticeerd door beeldvormingsonderzoek en neurochirurgische clipping hadden ondergaan in The First Affiliated Hospital of USTC, Division of Life Sciences and Medicine, University of Science and Technology of China, werden geselecteerd voor onze experimenten. Er waren 11 mannen en 9 vrouwen van 43,27 ± 6,25 jaar oud. De IA-weefsels werden bemonsterd. Tegelijkertijd werden de temporale corticische arteriële vasculaire weefsels van de temporale pool gerezececteerd van 20 patiënten (controlegroep) met temporale lobe epilepsie veroorzaakt door amygdala en hippocampale sclerose. De gerezececteerde weefsels werden na operatie histopathologisch als normale arteriële weefsels onderzocht, en er waren 13 mannen en 7 vrouwen van 44,18 ± 5,91 jaar oud. Er werd geen significante discrepantie herkend in geslacht en leeftijd tussen de IA-groep en controlegroep (beide P > 0,05). Veneuze bloedmonsters (2 buisjes) werden van alle proefpersonen in vastende conditie op hetzelfde moment in de ochtend voor de operatie verkregen.
Vestiging van Ratmodellen van IA
Zestig schone-gradige Sprague-Dawley mannelijke ratten (Hunan SJA Laboratory Animal Co., Ltd., Hunan, China), gewicht tussen 200 en 250 g, werden 7 dagen opgevoed (25 ± 2 °C, relatieve vochtigheid 65-70%, 12 uur licht en donker cyclus, vrije water- en voedselinname). Ratten werden gedropt met varkens pancreaselastase naar de externe halsslagader en rond de bifurcatie arteriewand. De externe halsslagader werd geligeerd met twee chirurgische draden aan de tak van de externe halsslagader op ongeveer 1,5 mm. De externe halsslagader werd tussen de twee draden doorgehaald om een interne halsslagader aneurysma in het blinde segment van de externe halsslagader te vormen. Ratten werden 1 week na operatie gevoed met 1% zoutoplossing. Cerebrale angiografie werd na 1 maand uitgevoerd en de vorming van aneurysma werd geobserveerd.
Na de vestiging van IA-ratmodellen, werden 50 ratten willekeurig verdeeld in lege groep (n = 10, gemodelleerde ratten werden behandeld met stereotactische injectie van 100 μL fosfaatgebufferde saline (PBS) eenmaal per dag), short hairpin RNA (sh)-negatieve controle (NC) groep (n = 10, gemodelleerde ratten werden behandeld met stereotactische injectie van 100 μL sh-MALAT1 NC eenmaal per dag), sh-MALAT1 groep (n = 10, gemodelleerde ratten werden behandeld met stereotactische injectie van 100 μL sh-MALAT1 plasmid eenmaal per dag), overexpressie (Oe)-NC groep (n = 10, gemodelleerde ratten werden behandeld met stereotactische injectie van 100 μL Oe-MALAT1 NC plasmid eenmaal per dag), en Oe-MALAT1 groep (n = 10, gemodelleerde ratten werden behandeld met stereotactische injectie van 100 μL Oe-MALAT1 plasmid eenmaal per dag). De bovenstaande plasmids waren samengesteld door Shanghai Genechem Co., Ltd. (Shanghai, China).
Bloeddruk Test van Ratten
De bloeddruk van de staartarterie van ratten werd gemeten op de 1e, 4e en 12e week na operatie. Voor het meten van de bloeddruk werden de ratten in een constant temperatuur verwarmingsapparaat geplaatst om de verstoring van de externe temperatuur te voorkomen. Ten tweede werden de ratten enkele minuten rustig gehouden in een speciale rattenkooi om de interferentie van activiteit te voorkomen. Als de bloeddruk in grote mate varieerde, werd het twee of drie keer op verschillende tijden bepaald om de gemiddelde waarde te verkrijgen.
Aneurysma Weefselverwerking
Na 3 maanden werden ratten geanesthetiseerd met 1% pentobarbitaalnatrium (40 mg/kg) door intraperitoneale injectie om bloedmonsters van de vene te verkrijgen. Ratten werden geofferd, en de borstkas werd geopend, de linker ventrikel geïntubeerd in de aorta, en de cave werd doorgehakt om het bloed vrij te maken. Tegelijkertijd werd 30 mL normaal zout met heparine natrium gebruikt voor snelle cardiale perfusie om bloed weg te spoelen, en daarna werd 10 mL 10% polyformaledehyde/0,1 M PBS (pH 7,4) in de hersenen geïnjecteerd. Na perfusie en fixatie werd de hersenen van de rat geopend. De arteriële circulatie in de schedelbasis werd zorgvuldig geobserveerd, het aneurysmaweefsel werd gescheiden, en de veranderingen van het aneurysma werden onder de microscoop geobserveerd.
Enzyme-Linked Immunosorbent Assay (ELISA)
Serum-gerelateerde indices werden getest met ELISA-kit. De verzamelde bloedmonsters werden in een 37 °C thermostaat geplaatst voor 1 uur en gecentrifugeerd met 3000 t/min gedurende 10 min. Detectie van endotheline-1 (ET-1) en von Willebrand factor (vWF) expressie werd uitgevoerd conform de instructies van de kit (alle kits waren gekocht van NanJing JianCheng Bioengineering Institute, Jiangsu, China).
Hematoxyline-Eosine (HE) Kleuring
De monsters werden gefixeerd met 10% formaline voor meer dan 24 uur en bewaard in paraffinblokken. De paraffinblokken werden ontwasst met xyleen voor 20 min, gedeshydrateerd met gradiënt dalende reeks alcohol (100%, 95%, 80%, 75%) voor 1 min, en gekleurd met hematoxyline voor 10 min. Vervolgens werden de weefsels gespoeld met gedistilleerd water, gedifferentieerd met chlorwaterstofzuur ethanol voor 30 s, en geweekt in warm water van 50 °C voor 5 min. Gekleurd met eosine-oplossing, werden de weefsels gespoeld met gedistilleerd water, gedeshydrateerd met 70% en 90% alcohol, geklaard met xyleen, en geseald met neutrale gom. De morfologie van de weefsels werd geobserveerd onder een hoog-vermogen microscoop.
Transmissie-Elektronenmicroscoop Observatie
De overige weefsels werden gefixeerd met 2,5% glutaraldehyde en 1% oszuur, gedeshydrateerd en vervolgens ingebed met Epon812 hars. De half-dunne coupes werden gekleurd met toluidineblauw, getrimd, en gemaakt tot ultra-dunne coupes. De coupes werden gekleurd met uranylaacetaat en loodcitraat en geobserveerd door een JME-2000EX transmissie-elektronenmicroscoop (Hitachi High-Technologies Co., Ltd., Shanghai, China).
Terminal Deoxynucleotidyl Transferase-Mediated Deoxyuridine Triphosphate-Biotin Nick End-Labeling (TUNEL) Kleuring
TUNEL-kleuring werd toegepast om endotheelcellaapoptose in IA-ratten te observeren op basis van TUNEL-kit (Roche, Basel, Zwitserland). De voorbereide rat-aneurysma coupes werden tweemaal gewassen met xyleen (5 min/keer) en gedeshydrateerd met dalende reeks alcohol (100%, 95%, 80%, 75%) voor 3 keer (5 min/keer). De weefsels werden behandeld met 20 μg/mL protease K oplossing zonder DNase voor 15-30 min, gedruppeld met 50 μL TUNEL-reactieoplossing voor 60 min, en ontwikkeld met 50 μL diaminobenzidine (DAB) bij 25 °C voor 10 min. Vervolgens werden coupes tegengekleurd met hematoxyline, gedeshydrateerd met gradiënt alcohol, geklaard met xyleen, en geseald met neutrale gom. De coupes werden geobserveerd onder de optische microscoop en de apoptotische index werd berekend.
Isolatie en Identificatie van Aneurysma Vasculaire Endotheelcellen
Endotheelcelisolatie werd uitgevoerd volgens de methode uitgevoerd door Boscolo et al. De IA-weefsels werden gesectioneerd in 3 mm² fragmenten. De weefsels werden geïncubeerd met 0,1% collagenaase B/0,1% dispase (Roche) voor 25 min bij 37 °C. Vervolgens werden de voor-onthechte weefsels 2 min gehakkerd door een 2 mL pipet en gefilterd met een 100-μm zeef (Thermo Fisher Scientific, Rockford, IL, VS). Vervolgens werd celsuspensie gecentrifugeerd en vervolgens heropgelost in MV2-medium (met inbegrip van groeifactoren en 20% foetale bovine serum) (PromoCell, Heidelberg, Duitsland). De cellen werden gezaaid met 1 × 10⁴ cellen/mL in een cultuurfles gecoate met 1 μg/cm² fibronectine. Volgend de methode beschreven door Jackson et al., werden de cellen van 80-100% confluente gescheiden met de kralen (Dynabeads M-450 Tosylactived, Oxoid, Hampshire, UK) gecoate met Ulex europaeus Agglutinin I (UEA) (Vector Laboratories, Ltd., Peterborough, UK). De endotheelcellen die gehecht waren aan de lectine-gecoate kralen werden verzameld met een magnetische deeltjesconcentrateur en de niet-geconjugeerde cellen werden gewassen met een basaal medium. De UEA-positieve cellen werden heropgelost in het cultuurmedium en gezaaid in de fibronectine-gecoate cultuurfles om de adhesie en groeisnelheid van de cellen te verbeteren.
Cellen werden gekweekt in MV2 op fibronectine-gecoate kamertjes. Toen de celconfluente 80-100% bereikte, werden de cellen vastgezet in aceton bij 4 °C en behandeld met 1% Triton X-100 voor 5 min en vervolgens 0,5% bovine serum albumine (BSA) voor 15 min. De cellen werden bedruppeld met primaire antilichaam tegen vWF (1:300, Abcam, Cambridge, MA, VS) en geïncubeerd voor 2 uur (NC werd uitgevoerd in afwezigheid van primaire antilichaam), bedruppeld met perioxidase-geconjugeerd immunoglobuline G (1:150, Abcam) en geïncubeerd voor 30 min. Vervolgens werden cellen ontwikkeld met 50 μL DAB bij 25 °C voor 5 min, tegengekleurd met hematoxyline, gedifferentieerd met 0,1% chlorwaterstofzuur, gedeshydrateerd met alcohol, gevolgd door xyleen klaring, en neutrale gom verzegeling. Na drogen werden cellen gefotografeerd onder een omgekeerde microscoop.
Celgroepering en Transfectie
De aneurysma vasculaire endotheelcellen in de logaritmische fase werden toegewezen aan 5 groepen: lege groep (aneurysma vasculaire endotheelcellen zonder enige behandeling), sh-NC groep (aneurysma vasculaire endotheelcellen getransfecteerd met sh-MALAT1 NC plasmid), sh-MALAT1 groep (aneurysma vasculaire endotheelcellen getransfecteerd met sh-MALAT1 plasmid), Oe-NC groep (aneurysma vasculaire endotheelcellen getransfecteerd met Oe-MALAT1 NC plasmid), en Oe-MALAT1 groep (aneurysma vasculaire endotheelcellen getransfecteerd met Oe-MALAT1 plasmid). De bovenstaande plasmids werden gesynthetiseerd door Genechem. Celtransfectie werd uitgevoerd conform de instructies van het lipofectamine™ 2000 reagent (11668-027, Invitrogen, Carlsbad, Californië, VS).
3-(4, 5-Dimethylthiazol-2-Yl)-2, 5-Diphenyltetrazolium Bromide (MTT) Assay
De vasculaire endotheelcellen van elke groep werden gezaaid op een 96-puttenplaat met een dichtheid van 3 × 10⁴ cellen/mL en gekweekt bij 37 °C, 5% CO₂ voor 48 uur. Elke groep werd ingesteld met 5 parallelle putten, en elke put werd toegevoegd met 20 μL verse MTT-oplossing (5 mg/mL, Sigma, St. Louis, MO, VS). Na 4-uurs reactie werden de cellen gemengd met 200 μL dimethylsulfoxide. Na volledige oplossing werd de optische dichtheidwaarde van cellen in elke groep gemeten door een microplaatlezer (BioRad, Hercules, Californië, VS) bij 490 nm.
Flow Cytometrie
Celcyclusverdeling werd getest door propidium iodide (PI) kleuring. Vasculaire endotheelcellen werden losgemaakt, gecentrifugeerd, heropgelost in voorverkoeld 75% ethanol, en overnight vastgezet bij -20 °C. De cellen werden gecentrifugeerd om het supernatant te verwijderen. Cellen werden toegevoegd met 450 μL PBS, toegevoegd met 100 μL Rnase A, en gekleurd met 400 μL PI bij 4 °C voor 30 min, licht vermijdend. Een flow cytometer (FACSCalibur, Becton, Dickinson and Company, NJ, VS) werd gebruikt om de celcyclusverdeling te testen.
Celaapoptose werd getest door Annexin V/PI dubbele kleuring. Losgemaakte endotheelcellen werden verzameld en gewassen met PBS 3 keer. Cellen werden heropgelost in 100 μL voorverkoeld 1 × binding buffer en gemengd met 5 μL Annexin en 5 μL PI, respectievelijk. Celaapoptose werd getest door een flow cytometer. Met AnnexinV als transversale as en PI als longitudinale as, stond de linkerbovenkwadrant voor mechanisch gewonde cellen (AnnexinV⁻/PI⁺), de rechterbovenkwadrant voor late apoptotische cellen of necrotische cellen (AnnexinV⁺/PI⁺), de linkeronderkwadrant voor negatieve normale cellen (AnnexinV⁻/PI⁻), en de rechteronderkwadrant voor vroege apoptotische cellen (AnnexinV⁺/PI⁻). De totale apoptotische cellen (AnnexinV⁺/PI⁻ en AnnexinV⁺/PI⁺) werden berekend en uitgedrukt als percentage.
Reverse Transcriptie Kwantitatieve Polymerase Kettingreactie (RT-qPCR)
De totale RNA's in de weefsels en cellen werden geëxtraheerd met Trizol (Takara Biotechnology Ltd., Dalian, China), en de concentratie en zuiverheid van RNA werden bepaald. Het proces van reverse transcriptie van RNA in complementaire DNA werd uitgevoerd conform de instructies van reverse transcriptie kit (K1621, Fermentas, Maryland, NY, VS). MALAT1, miR-143 en VEGFA primer sequenties (Tabel 1) waren ontworpen en samengesteld door Genechem. Om de expressie van lncRNA, miRNA of mRNA te evalueren, werd RT-qPCR uitgevoerd met SYBR GreenPCR Master Mix (Takara, Tokyo, Japan) met Roche Real-Time PCR systeem (Roche). U6 werd ingesteld als interne parameter van miR-143, terwijl MALAT1 en VEGFA, met glyceraldehyde-3-fosfaat dehydrogenase (GAPDH) als interne parameters. De relatieve transcriptieniveaus van doelgenen werden berekend met 2⁻ΔΔCt methode.
Western Blot Analyse
Totale eiwit uit weefsels en cellen werd geëxtraheerd. De eiwitconcentratie werd bepaald door de instructies van bicinchoninezuur kit (Boster Biological Technology Co. Ltd., Wuhan, Hubei, China). Het eiwit werd gescheiden door elektroforese met 10% polyacrylamide gel (Boster Biological Technology). Het membraan werd overgebracht op een polyvinylidene fluoride membraan en vervolgens geseald met 5% BSA voor 1 uur. Het membraan werd geïncubeerd met primaire antilichamen tegen Ki-67 (1:1000), VEGFA (1:1000), vWF (1:1000) en matrix metalloproteinase (MMP)-9 (1:1000, Abcam, Cambridge, UK), Cyclin D1 (1:1000), Bax (1:1000) en Bcl-2 (1:1000, Santa Cruz Biotechnology, Santa Cruz, Californië, VS), en GAPDH (1:2000, Jackson Immuno Research, Grove, Pennsylvania, VS) en met het secundaire antilichaam (1:500, Jackson Immuno Research) gelabeld met perioxidase. Het membraan werd verkregen door Odyssey twee-kleur infrarood fluorescntie scanning imaging systeem, en de grijze waarden van banden werden gemeten door Quantity One beeldanalysesoftware.
Dubbele Luciferase Reporter Gen Assay
De bindingsplaatsen van MALAT1 en miR-143 werden voorspeld en uitgelegd door bio-informatica website (https://cm.jefferson.edu/rna22/Precomputed/). De bindingsrelatie tussen MALAT1 en miR-143 werd verder geverifieerd door luciferase reporter gen assay. Het synthetische MALAT1 3'onverteerde regio (3'UTR) genfragment werd geïntroduceerd in pmiR-Report luciferase reporter vectoren (Thermo Fisher Scientific) om MALAT1 wild-type (MALAT1-WT) te genereren door endonuclease plaats Bamh1 en Ecor1. De complementaire sequentie mutatieplaats van de sequentie werd ontworpen op MALAT1-WT, en het doelfragment werd ingevoegd in de pmiR-Report luciferase reporter vectoren om MALAT1 mutante-type (MALAT1-MUT) te produceren door T4 DNA ligase na restrictie-endonuclease vertering. De correct gesequenceerde MALAT1-WT en MALAT1-MUT werden geco-transfecteerd met mimic NC en miR-143 mimic in vasculaire endotheelcellen. De cellen werden geoogst en gelyst 48 uur na transfectie, en luciferase activiteit werd getest door luciferase detectie kit (BioVision, San Francisco, CA, VS) met een luminometer (Glomax20/20, Promega, Madison, Wisconsin, VS).
De doelrelatie van miR-143 en VEGFA en bindingsplaats van miR-143 en VEGFA 3'UTR werden voorspeld door bio-informatica website (https://www.targetscan.org/vert_72/). De sequentie van VEGFA 3'UTR promoter regio met miR-143 bindingsplaats was samengesteld en gecloned in pmiR-Report luciferase reporter vectoren om VEGFA-WT te genereren. Op basis van deze reporter, werd de bindingsplaats van VEGFA-WT en miR-143 gemuteerd om VEGFA-MUT te vormen. VEGFA-WT of VEGFA-MUT reporter werd gemengd met mimic NC of miR-143 mimic en vervolgens geco-transfecteerd in vasculaire endotheelcellen voor 48 uur. Daarna werden de cellen gelyst en de luciferase activiteit getest door een luciferase detectie kit.
RNA-Pull Down Assay
Om de bindingsrelatie tussen miR-143 en MALAT1 te verifiëren, werd RNA-pull down assay geïmplementeerd. Drie biotine-gelabelde miRNA sequenties Bio-miR-143-WT, Bio-miR-143-MUT en Bio-miR-NC waren ontworpen en toevertrouwd aan GenePharma Company (Shanghai, China). Deze biotine-gelabelde oligonucleotide werden in cellen getransfecteerd voor 48 uur. Vervolgens werden de cellen geoogst en geïncubeerd met een specifieke cellysaat (Ambion, Austin, Texas, VS) voor 10 min. Daarna werd het lyst gehatcht met M-280 streptavidine kralen voorbehandeld met RNase-vrij en gist tRNA (alle van Sigma) bij 4 °C voor 3 uur, vervolgens twee keer gewassen met een koude lyseoplossing, drie keer met een laag zout buffer, en een keer met hoog-zout bufferoplossing. Een antagonistische miR-143 probe werd ingesteld als NC. Totale RNA werd geëxtraheerd met Trizol en vervolgens MALAT1 verrijkingsniveau getest met RT-qPCR.
Statistische Analyse
Alle data werden uitgelegd door SPSS 21.0 software (IBM Corp. Armonk, NY, VS). De meetdata werden voorgesteld door gemiddelde ± standaarddeviatie. Vergelijkingen tussen twee groepen werden uitgevoerd door onafhankelijke steekproef t-toets, terwijl vergelijkingen tussen meerdere groepen werden beoordeeld door eénrichtings variantieanalyse (ANOVA), en pairwise vergelijkingen werden geïmplementeerd door Tukey's meervoudige vergelijkingstoets. De relatie tussen MALAT1 expressie en de clinicopathologische kenmerken van IA werd bepaald door chi-kwadraattoets. P-waarde minder dan 0,05 was indicatief voor statistisch significant verschil.
Resultaten
MALAT1 en VEGFA Zijn Overexprimeerd en miR-143 Is Gedownreguleerd in IA-Weefsels
ET-1 en vWF expressie in serum in de IA-groep en controlegroep werden gedetecteerd door ELISA, en de resultaten toonden aan dat ET-1 en vWF expressie toegenamen in de IA-groep versus de controlegroep (beide P < 0,05) (Fig. 1a, b).
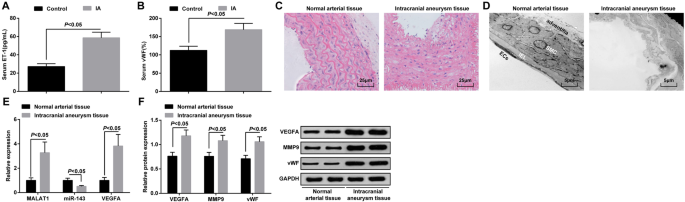
De pathologische veranderingen van IA-weefsels werden geobserveerd door HE-kleuring. Geen duidelijke schade in endoderm, endotheelcellen en gladde spiercellen werd gezien in normale arteriële weefsels, en de cellen waren netjes gerangschikt en hadden een complete structuur. De IA-weefsels presenteerden beschadigde endotheelcellen, gedegeneerde gladde spiercellen, uitgeziene arteriewand, geruptureerde elastische vezels en geïnfiltreerde inflammatoire cellen (Fig. 1c).
Ultrastructuurveranderingen van IA en normale arteriële weefsels werden geobserveerd door een transmissie-elektronenmicroscoop. Er werd gevonden dat de endotheelcellen compleet waren en adventitia-structuur intact was; geen gebroken interne elastische membraan of apoptotische gladde spiercellen werden gezien in normale arteriële weefsels. In IA-weefsels werd gepresenteerd met ernstige degeneratie van bloedvatwand, voornamelijk ge manifesteerd als het verdwijnen van de meeste endotheelcellen, ernstig gebroken interne elastische laag, ernstig beschadigde en gedegradeerde gladde spiercellen, en de wanorde van de buitenmembraan van het bloedvat (Fig. 1d).
RT-qPCR werd uitgevoerd voor het bepalen van MALAT1, miR-143 en VEGFA mRNA expressie, terwijl western blot analyse voor VEGFA, MMP-9 en vWF eiwitexpressie in IA-weefsels en normale arteriële weefsels. Het werd gedemonstreerd dat in tegenstelling tot de normale arteriële weefsels, MALAT1, VEGFA, MMP-9 en vWF expressieniveaus verhoogd waren en miR-143 expressie was afgenomen in IA-weefsels (alle P < 0,05) (Fig. 1e, f).
Hunt-Hess Graad, Graad van Endotheelschaade en Roken Geschiedenis Zijn Gecorreleerd met MALAT1 Expressie in IA-Weefsels
In het licht van de mediaan expressie van MALAT1, werden de patiënten ingedeeld in twee groepen: lage expressiegroep en hoge expressiegroep. De relatie tussen MALAT1 expressie en de clinicopathologische kenmerken van patiënten met IA werd geanalyseerd. De resultaten suggereerden dat Hunt-Hess graad, graad van endotheelschaade en rookgeschiedenis geassocieerd waren met MALAT1 expressie (alle P < 0,05), terwijl leeftijd, geslacht en chirurgische modus niet gerelateerd waren aan MALAT1 expressie (alle P > 0,05) (Tabel 2).
Gedownreguleerde MALAT1 Remt de Bloeddruk, de Expressie van ET-1, vWF en MMP-9, Evenals de Apoptotische Index van Vasculaire Endotheelcellen van Ratten met IA
Zoals weergegeven in Tabel 3, verlaagde MALAT1 knockdown, terwijl MALAT1 herstel de bloeddruk verhoogde op de 4e en 12e week.
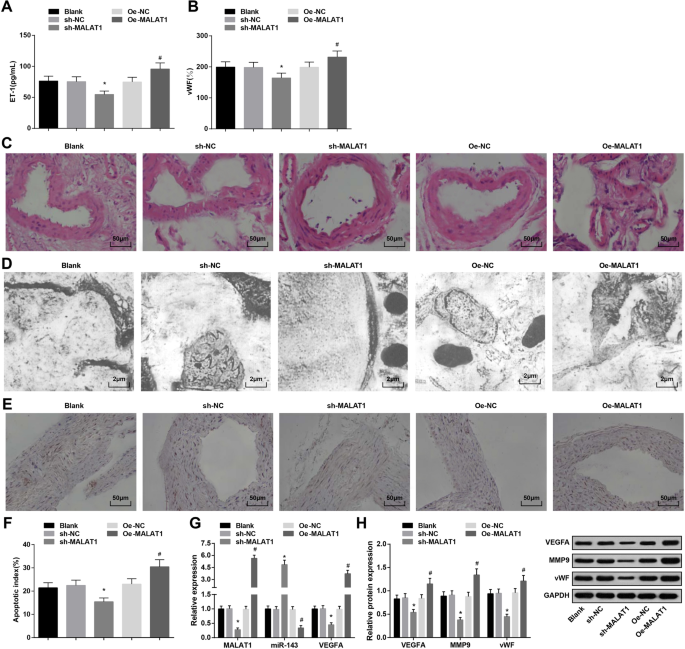
De pathologische veranderingen van IA-weefsels in elke groep wurden onderzocht met HE-kleuring. De lege groep, sh-NC groep en Oe-NC groep werden ge manifesteerd met beschadigde binnenmembraan, losgeloste endotheelcellen, gedegeneerde gladde spiercellen, verminderde cellen en lagen, en uitgeziene arteriewand. In de sh-MALAT1 groep waren de endodermis, endotheelcellen, gladde spiercellaag en buitenmembraanlaag van intracraniële arterie licht beschadigd maar netjes gerangschikt. De Oe-MALAT1 groep toonde verdwenen intima-laag, losgeloste endotheelcellen, gebroken elastische vezels en geïnfiltreerde inflammatoire cellen (Fig. 2c).
De IA-weefsels van ratten in elke groep werden geobserveerd door een transmissie-elektronenmicroscoop. Het werd getoond gedeneatureerde endotheelcellen, ontbindende subendotheliale laag, verdwenen interne elastische laag en verminderde gladde spiercellen werden gepresenteerd in de lege groep, sh-NC groep en Oe-NC groep. De sh-MALAT1 groep toonde platte endotheelcellen, ovale kern en verhoogde collageenvezels maar zonder elastische laag. De Oe-MALAT1 groep werd gekenmerkt door verdwenen endotheelcellen en gescheiden elastische laag van de spierlaag, die ontbonden werd in de lumen (Fig. 2d).
De apoptotische index van vasculaire endotheelcellen in IA-rat werd getest door TUNEL-kleuring. Dempen van MALAT1 verlaagde de apoptotische index van vasculaire endotheelcellen, terwijl overexprimeerde MALAT1 het tegenovergestelde effect vertoonde (Fig. 2e, f).
RT-qPCR detectie van MALAT1, miR-143 en VEGFA mRNA expressie, en western blot analyse van VEGFA, MMP-9 en vWF eiwitexpressie in IA-weefsels presenteerden dat MALAT1 eliminatie MALAT1, VEGFA, MMP-9 en vWF expressie verlaagde en miR-143 expressie verhoogde. Integendeel, MALAT1 elevatie imposeerde de tegenovergestelde invloeden op deze genexpressies (Fig. 2g, h).
Lage Expressie van MALAT1 Bevordert Viabiliteit en Remt Apoptose van Vasculaire Endotheelcellen in IA
Immunohistochemische kleuring werd gebruikt om de expressie van endotheel-specifieke marker vWF te detecteren. Het werd ge manifesteerd dat het cytoplasma van IA vasculaire endotheelcellen bedekt was met fijn bruine deeltjes, wat positief was, terwijl het cytoplasma in zijn NC-groep geen bruine deeltjes had. De resultaten bevestigden dat de gekweekte cellen endotheelcellen waren (Fig. 3a, b).
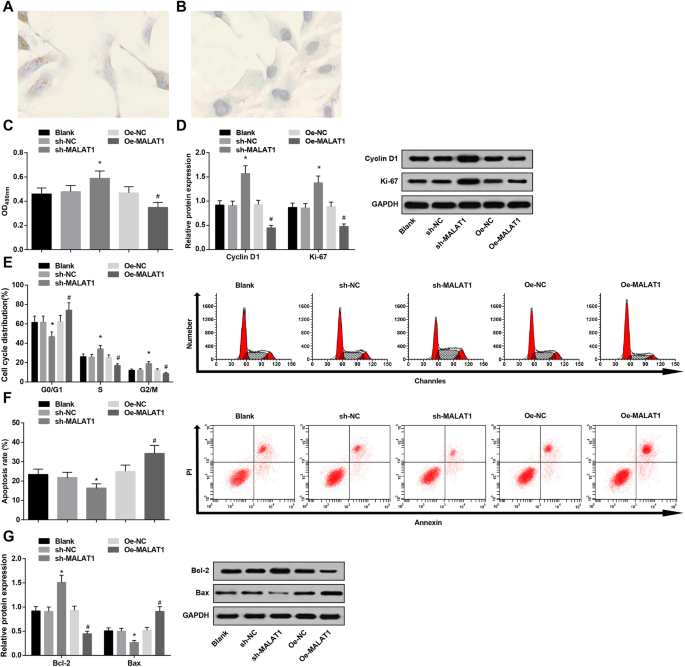
MTT-assay, flow cytometrie, samen met western blot analyse werden gebruikt om vasculaire endotheelcel viabiliteit en apoptose te testen. Het werd getoond dat MALAT1 afname vasculaire endotheelcel viabiliteit bevorderde (verhoogde Cyclin D1 en Ki-67 expressie) en apoptose remde (verminderde G0/G1 fase cellen en verhoogde S en G2/M fase cellen, verlaagde Bax en verhoogde Bcl-2 expressie). Echter, MALAT1 upregulatie functioneerde op een tegenovergestelde manier ten opzichte van MALAT1 afname op celviabiliteit en apoptose (Fig. 3c-g).
MiR-143 Is Gebonden aan MALAT1 en VEGFA Is een Doelgen van miR-143
MALA1, miR-143 en VEGFA expressie in vasculaire endotheelcellen van elke groep werden geverifieerd door RT-qPCR en western blot analyse. De resultaten presenteerden dat MALA1 knockdown MALA1 en VEGFA expressie verlaagde en miR-143 expressie verhoogde. Integendeel, MALA1 upregulatie leidde tot toename in MALAT1 en VEGFA expressie en afname in miR-143 expressie (Fig. 4a, b).
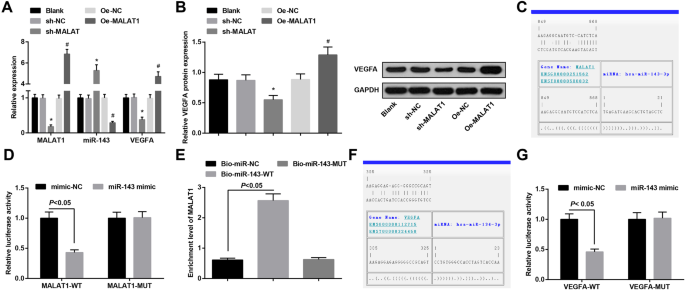
De specifieke bindingsregio tussen MALAT1 en miR-143 werd voorspeld door online analyse software (Fig. 4c). De resultaten van dubbele luciferase reporter gen assay onthulden dat de luciferase activiteit verminderd was in de MALAT1-WT + miR-143 mimic groep versus de MALAT1-WT + mimic-NC groep (P < 0,05). Echter, er was geen duidelijk verschil in luciferase activiteit in de MALAT1-MUT + miR-143 mimic groep ten opzichte van die in de MALAT1-MUT + mimic-NC groep (P > 0,05), wat aangeeft dat miR-143 specifiek gebonden was aan MALAT1 (Fig. 4d). De resultaten van RNA-pull down assay rapporteerden dat het verrijkingsniveau van MALAT1 in de Bio-miR-143-WT groep verhoogd was ten opzichte van de Bio-miR-NC groep (P < 0,05), maar er was geen duidelijk verschil in MALAT1 verrijkingsniveau in de Bio-miR-143-MUT groep (P > 0,05) (Fig. 4e).
Bio-informatica software voorspelde een doelrelatie tussen miR-143 en VEGFA (Fig. 4f). De resultaten van luciferase activiteit toonden aan dat de relatieve luciferase activiteit onderdrukt werd na VEGFA-WT en miR-143 mimic geco-transfecteerd in vasculaire endotheelcellen (P < 0,05). Echter, de relatieve luciferase activiteit van vasculaire endotheelcellen werd niet beïnvloed door co-transfectie van VEGFA-MUT en miR-143-mimic (P > 0,05) (Fig. 4g). Het werd aangegeven dat VEGFA een direct doelgen was van miR-143.
Discussie
IA is een ernstige intracraniële ziekte, die voornamelijk leidt tot subarachnoidale bloeding. Een eerdere studie heeft de betrokkenheid van lncRNA-gerelateerde competitieve endogene RNA-netwerken in IA gedemonstreerd. Ook heeft een recente studie bewijs geleverd dat functionele polymorfisme in miR-143/145 gen promoter regio verbonden is met het risico op IA. In een studie uitgevoerd door Xu et al., wordt getoond dat overexpressie van angiogene factoren zoals VEGFA gerelateerd kan zijn aan IA-vorming en ruptuur. Om het moleculaire mechanisme van MALAT1 in IA te verklaren, zijn een reeks assays uitgevoerd en de resultaten onthulden dat IA geïnduceerd door vasculaire endotheelschaade gereguleerd werd door MALAT1/miR-143/VEGFA signaalas.
Allereerst heeft onze studie substantieel bewijs geleverd dat MALAT1 en VEGFA upreguleerd zijn en miR-143 gedowngereguleerd in IA-weefsels. Een recente studie heeft gepresenteerd dat MALAT1 een van de meest upreguleerde lncRNA's is in het proces van cerebrale ischemie. Een andere studie heeft gepresenteerd dat MALAT1 upreguleerd is in ovariële kankercellen en deeltname beoogt in de processen van ovariële kankercel apoptose, migratie en proliferatie. Een studie betreffende het expressieprofiel van ongeruptureerde en geruptureerde IA heeft gedemonstreerd dat de expressie van angiogene factoren zoals VEGFA upreguleerd is in geruptureerde aneurysma. Bovendien heeft een klinische studie gepresenteerd dat de miR-143/145 cluster van IA-patiënten gedowngereguleerd is vergeleken met gezonde proefpersonen. Daarnaast is het eerder besproken dat miR-143/145 deelneemt aan diverse biologische processen geassocieerd met aneurysmavorming en is gedowngereguleerd in patiënten met IA. Al deze bevindingen kloppen min of meer met de eerdere verkenningsresultaten.
Behalve de bovengenoemde bevindingen, heeft deze studie ook de functionele rol van MALAT1 in IA verkend door gain-of-function en loss-of-function assays. Het kan samengevat worden dat downregulatie van MALAT1 bloeddruk, serumniveaus van ET-1, en vWF en MMP-9 expressie in IA-weefsels verlaagde. Er is eerder voorgesteld dat downregulatie van MALAT1 de upregulatie van glucose-geïnduceerde ET-1 transcriptieproduct remt. Ook is gerapporteerd dat ectopische MALAT1 expressie de inducer is van vWF-generatie. Een andere studie heeft geverifieerd dat de depleting van MALAT1 in botmerg-gederiveerde macrofagen de expressie van MMP-9 remt.
Ook zijn celexperimenten uitgevoerd voor verdere bevestiging van de functies van MALAT1 in IA. De resultaten hebben gesuggereerd dat MALAT1 knockdown vasculaire endotheelcel viabiliteit bevorderde en apoptose remde in IA. Vergelijkbaar is gedocumenteerd dat storing van MALAT1 de aortamurale architectuur verbetert en aneurysmagroei vertraagt. Aanvullend op onze studievinding, is er onderzoek dat benadrukt dat lage expressie van MALAT1 apoptose induceert en proliferatie remt van acute myeloïde leukemie cellen. Een andere studie heeft ook de remmende effecten van MALAT1 knockdown op proliferatie van humane osteoarthrose kraakbeelcellen gedemonstreerd. Bovendien bevestigt een eerder onderzoek over het algemeen dat downregulatie van MALAT1 apoptose kan induceren en proliferatie van gliomcellen verzwakt. Maar ook, lage expressie van MALAT1 geïnduceerd door RNA-interferentie bevordert apoptose en onderdrukt proliferatie van multiple myeloom cellen. Collectief hebben deze studies het moleculaire mechanisme van MALAT1 in IA tot op zekere hoogte uitgelegd.
Daarnaast heeft deze studie bewijs geleverd dat miR-143 gebonden is aan MALAT1 en VEGFA een doelgen is van miR-143. Vergelijkbaar stelt een paper dat MALAT1 direct bindt aan miR-143 en de expressie ervan onderdrukt. Zhu et al. vonden dat MALAT1 zijn rollen uitoefent via interactie met miR-143 in cervixcarcinoom cellen. Het is verder bevestigd dat MALAT1 indirect VEGFA moduleert via miR-200b-3p. Bovendien heeft een andere studie gesuggereerd dat miR-143-3p ZFPM2 effect medieert op een aantal eiwitdoelen in bloed, inclusief VEGFA. Niettemin, de interacties tussen MALAT1, miR-143 en VEGFA in IA zijn niet besproken en vereisen verder onderzoek.
Conclusie
Uit deze resultaten is het duidelijk dat MALAT1 knockdown apoptose remt en viabiliteit bevordert van vasculaire endotheelcellen in IA door de miR-143/VEGFA-as te moduleren. Het co-expressienetwerk suggereert de verbinding tussen MALAT1 en miR-143 met betrokkenheid van VEGFA. De bevindingen in deze studie onthullen deels de pathogenese van IA-initiatie en progressie, en de bestudeerde doelen kunnen een opmerkelijk potentieel ingangspunt zijn om de pathologie van IA vanuit een ander perspectief te onthullen. Beperkt, zijn verdere grootschalige studies vereist om de mechanismen van MALAT1/miR-143/VEGFA-as in IA volledig te illustreren.
Beschikbaarheid van Data en Materialen
Alle data gegenereerd of geanalyseerd tijdens deze studie zijn in deze studie opgenomen. De ruwe dataset verkregen en geanalyseerd tijdens het experimentele werk is beschikbaar bij de corresponderende auteur op redelijke verzoek.
Afkortingen
- lncRNA:
- Lange niet-coderende RNA
- MALAT1:
- Metastase-geassocieerde longadenocarcinoom transcript 1
- miR-143:
- MicroRNA-143
- VEGFA:
- Vasculaire endotheliale groeifactor-A
- MMP-9:
- Matrix metalloproteinase 9
- vWF:
- Von Willebrand factor
- ET-1:
- Endotheline-1
- IA:
- Intracraniële aneurysma
Nanomaterialen
- Verkeerslichten: Techniek, Geschiedenis en Toekomstige Innovaties
- Signaal K oppeling: AC Ruisonderdrukking in Telefoonkabels Begrijpen
- Combinatie‑buizen: Meerdere Functies in Een Enkel Glazen Envelop
- Spanningssignaal-systemen: accurate meting van watertankniveaus
- Stroomsignaal-systemen: de 4–20 mA lus uitgelegd
- Gemengde-Frequentie AC-Signalen: Koppeling, Harmonische, en Praktische Inzichten
- Lange en korte transmissielijnen in de elektrotechniek begrijpen
- Signaalintegriteit Zekerstellen in High-Speed PCB-ontwerp
- De juiste CNC-freesmachine kiezen: 3-as vs 4-as machines
- Atoom-gebaseerde Radio Sensor Onthult Signaalrichting voor Schonere Communicatie
- C++ Signaalverwerking onder de knie: Veilige interruptafhandeling en schone programmaterminatie